Wikipedia · einfach zusammengefasst · Stand
DNA-Methylierung
Bei der DNA-Methylierung handelt es sich um eine chemische Abänderung an Grundbausteinen der Erbsubstanz einer Zelle. Diese Abänderung (Modifikation) wird …
Inhalt6 Abschnitte
Grundprinzip und Vorkommen
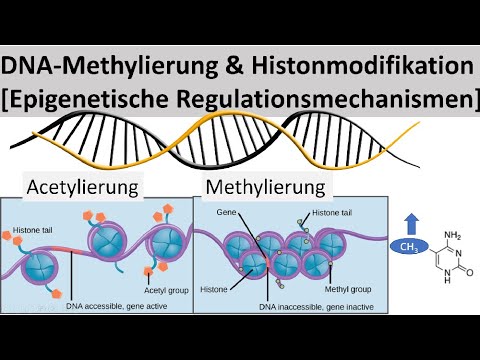
DNA-Methylierung ist eine chemische Modifikation von Nukleobasen, den Grundbausteinen der Erbsubstanz DNA. DNA-Methyltransferasen übertragen dabei Methylgruppen (–CH₃) an bestimmte Stellen der DNA. Das Grundgerüst der Base und die Reihenfolge der DNA-Bausteine bleiben erhalten: DNA-Methylierung ist deshalb keine genetische Mutation.
Sie kommt in allen drei Domänen des Lebens vor: Bakterien, Archaeen und Eukaryoten. Methylierungsmuster können sich am Muster der Mutterzelle orientieren und gehören dann zum epigenetischen Code, also zu vererbbaren oder teilweise vererbbaren Zuständen, die nicht unmittelbar durch die DNA-Sequenz bestimmt sind. Die DNA-Methylierung gilt als wichtigste epigenetische Veränderung.
Bis 2016 waren Adenin und Cytosin als natürlich enzymatisch methylierte Basen bekannt. Die veränderten Basen heißen N⁶-Methyladenin (6mA), 5-Methylcytosin (5mC) und N⁴-Methylcytosin (4mC). Bei Bakterien und Archaeen kommen alle drei Formen vor. In Eukaryoten ist häufig 5-Methylcytosin vorhanden, meist an CpG-Stellen; manche Arten besitzen auch oder vor allem N⁶-Methyladenin. Die Verteilung ist heterogen und wenig an Verwandtschaftsverhältnisse gekoppelt.
Methylierung bei Prokaryoten
Prokaryoten besitzen keinen Zellkern und keine echten Chromosomen. Dennoch können ihre Methylierungsmuster vererbt werden. Bei der Analyse von 230 Prokaryoten, darunter 217 Bakterien und 13 Archaeen, wurden bei 93 % der Organismen DNA-Methylierungen gefunden. Methylierungen ohne zugeordnetes Restriktionssystem sind weit verbreitet; ihre evolutionär konservierten Muster deuten auf eine Rolle bei der Genomregulation hin.
Bei Bakterien ist N⁶-Methyladenin wichtig für die Fehlerkorrektur nach der DNA-Replikation. In GATC-Tetrameren wird Adenin an der 6-Aminogruppe methyliert. Nach der Verdopplung ist zunächst nur der alte Strang methyliert; der neue Strang ist noch unmethyliert. Bei einer Fehlpaarung kann ein Reparaturkomplex dadurch den fehlerhaften Abschnitt des neuen Strangs erkennen, ausschneiden und korrekt ersetzen. Erst danach werden die Adenine des neuen Strangs methyliert.
DNA-Methylierung ist auch an Phasenvariationen beteiligt, etwa bei der Ausbildung von Pili. Bindet ein Protein an oder neben einer GATC-Stelle, kann es mit der Methyltransferase Dam konkurrieren und die Methylierung blockieren. So können alternative, stabile Methylierungsmuster entstehen. Über Archaeen ist weniger bekannt; nach dem Stand von 2016 dürfte Methylierung dort grundsätzlich ähnlich ablaufen und ähnliche Aufgaben erfüllen wie bei Bakterien.
Eukaryoten und verschiedene Organismengruppen
Eukaryoten besitzen einen Zellkern; ihre DNA ist mit Histonen zu Chromatin verbunden. DNA-Methylierung, Histon-Modifikationen und Chromatin-Struktur wirken eng zusammen. Eine Verdichtung des Chromatins kann Gene für die RNA-Polymerase schwer oder nicht ablesbar machen.
Bei Eukaryoten kann Adenin zu N⁶-Methyladenin und Cytosin zu 5-Methylcytosin methyliert werden. Manche Arten nutzen hauptsächlich Adenin, etwa Penicillium, Caenorhabditis elegans und Drosophila; bei Arabidopsis, Neurospora und dem Menschen steht 5-Methylcytosin im Vordergrund. Chlamydomonas nutzt beide Basen. Bei Wirbeltieren werden vor allem Cytosine in CpG-Dinukleotiden methyliert. CpG-Inseln sind Genomregionen mit besonders vielen CpG-Dinukleotiden.
In Arabidopsis thaliana kann Cytosin an CpG-, CpHpG- und CpHpH-Stellen methyliert sein; H steht für jedes Nukleotid außer Guanin. Der Anteil modifizierter Cytosine wurde auf 14 % geschätzt. DRM2 erzeugt Methylierungen neu (De-novo-Methylierung); MET1 und CMT3 helfen, Markierungen nach der Replikation zu erhalten. RNA-dirigierte DNA-Methylierung (RdDM) kann über siRNAs oder miRNAs neue Methylierungen an bestimmten DNA-Regionen lenken und könnte RNA-Viren oder RNA-Transposons abschalten.
Bei Honigbienen liegen Methylierungsmarkierungen hauptsächlich innerhalb von Genen und werden mit Genregulation sowie alternativem Spleißen verbunden. Bei Drosophila beträgt die Cytosin-Methylierung nur 0,1–0,3 % des gesamten Cytosins; in frühen Embryonalstadien wurden 0,07 % Adenin-Methylierung gemessen. Bei Pilzen reichen Cytosin-Methylierungen von 0,1 bis 0,5 % bis zu 5 % des Genoms. In Saccharomyces cerevisiae und Schizosaccharomyces pombe wurde DNA-Methylierung nicht bestätigt. In Neurospora crassa beseitigt eine dim-2-Mutation zwar die gesamte DNA-Methylierung, beeinträchtigt aber weder Wachstum noch sexuelle Fortpflanzung. Bei niederen Eukaryoten ist die Spannweite ebenfalls groß: Dictyostelium discoidium hat etwa 0,006 % methylierte Cytosine, Physarum polycephalum bis zu 8 %.
Säugetiere: Gensteuerung, Entwicklung und Mutation
Bei Säugetieren werden durch die bekannten menschlichen DNA-Methyltransferasen nur Cytosine innerhalb von CpG-Stellen methyliert. Nach der Replikation entsteht ein hemimethylierter Zustand. DNMT1 übernimmt die Erhaltungs-Methylierung bei Zellteilungen, DNMT3a und DNMT3b setzen neue Methylierungen bei Zelldifferenzierungen; DNMT2 methyliert RNA. Methyl-CpG-bindende Proteine wie MECP2, MBD1 und MBD2 können weitere Proteine sowie Histon-Modifikationen anlagern. Dies fördert die Chromatin-Kondensierung und kann Transkription hemmen. Methylierung ist plastisch, weil Demethylierung den Zustand wieder verändern kann.
CpG-Inseln in Promotoren gesunder Zellen sind generell unmethyliert. Bei Promotoren mit niedriger CpG-Dichte hängt die Methylierung meist mit einer Inaktivierung des kontrollierten Gens zusammen. Methylierte Cytosine sind jedoch Mutationshotspots: Durch Desaminierung wird aus nichtmethyliertem Cytosin Uracil, das als DNA-fremde Base erkannt und meist repariert wird. Aus 5-Methylcytosin entsteht dagegen 5-Methyluracil, also Thymin. Thymin ist eine normale DNA-Base; eine C→T-Transition kann daher als Punktmutation erhalten und bei Keimzellen vererbt werden.
Während der Säugerentwicklung werden Methylierungsmuster größtenteils zweimal gelöscht und neu aufgebaut: während der Gametogenese sowie erneut in der frühen Embryogenese. In der Präimplantationsphase erfolgt Demethylierung zuerst in der Zygote und dann während der ersten Replikationszyklen von Morula und Blastula. Während der Implantation folgt eine Methylierungswelle, wobei CpG-Inseln geschützt sind. Danach sind Muster gewebs- und stadienabhängig. DNA-Methylierung ist besonders wichtig für genomische Prägung und X-Chromosom-Inaktivierung. Bei der Prägung werden mütterliche und väterliche Allele durch unterschiedliche Muster unterschieden; meist wird nur eines der beiden Allele genutzt.
Auch für Gedächtnisprozesse werden Veränderungen beschrieben. Im Gehirn von Mäusen sind 4,2 % aller Cytosine methyliert. Nach kontextabhängiger Angstkonditionierung waren bei Ratten nach 24 Stunden 9,2 % der Gene in Hippocampus-Neuronen differentiell methyliert. Bei Mäusen wurden vier Wochen später 1223 differentiell methylierte Gene im anterioren cingulären Cortex gefunden.
Schutz, Reparatur und Informationsnutzung
Bei Prokaryoten hilft DNA-Methylierung, eigene von fremder DNA zu unterscheiden. Methyltransferasen erzeugen auf der eigenen DNA ein charakteristisches Muster. Restriktionsendonukleasen schneiden bestimmte Sequenzen abhängig davon, ob passende Methylierungen vorhanden oder nicht vorhanden sind. Fremde DNA besitzt meist ein anderes Muster und wird deshalb häufig zerschnitten; selten kann sie integriert werden. Diese Integration heißt horizontaler Gentransfer.
Ein Beispiel ist Diplococcus pneumoniae: DpnM methyliert in der palindromischen Sequenz GATC das Adenosin. Unmethylierte fremde GATC-DNA wird wahrscheinlich durch DpnII geschnitten. Das schützt unter anderem vor Bakteriophagen, deren eingebrachte DNA in Stücke zerlegt wird.
Methylierung ermöglicht außerdem die postreplikative Fehlerkorrektur, weil alter und neuer DNA-Strang kurzzeitig verschieden markiert sind. Bei Eukaryoten wird die Nutzung der DNA als Informationsträger reguliert: Methylierungen in Bereichen vor einem Gen, etwa in CpG-Inseln, können die Lesehäufigkeit und damit die Genexpression verändern. Genomische Prägung ist ein Spezialfall dieser Genregulation. DNA-Modifikationen verändern zunächst nicht die Basenabfolge und sind daher keine Mutationen. Sie können aber, etwa durch die erhöhte C→T-Umwandlung an methyliertem Cytosin, Mutationen begünstigen.
Medizinische Bedeutung
Fehlerhafte Methylierungsmuster können Genaktivität dauerhaft erhöhen oder verringern und werden oft an Tochterzellen weitergegeben. Tumorzellen unterscheiden sich daher häufig deutlich von gesundem Gewebe. Eine Hypermethylierung im Promotor kann den Zugang transkriptionsaktiver Faktoren blockieren und das nachfolgende Gen unterdrücken. Zugleich ist die globale DNA-Methylierung in Tumorzellen oft geringer, weil normalerweise stark methyliertes Heterochromatin, besonders die Zentromerregion, weniger methyliert ist.
CpG-Inseln haben etwa 60 % GC-Gehalt, gegenüber etwa 40 % im Gesamtgenom; das Dinukleotid 5'-CpG-3' kommt dort zehn- bis zwanzigmal häufiger vor. Sie können in der humangenetischen Forschung zur Zuordnung von Genen zu genetischen Erkrankungen und für molekulargenetische Diagnosen genutzt werden.
Bei akuter myeloischer Leukämie ist häufig die CpG-Insel des Zellzyklushemmers P15, auch CDKN2B oder ink4b, methyliert. Beim Regulator P53 ist das Gen laut Artikel in 50 % aller menschlichen Tumoren hypermethyliert und inaktiviert. Azacytidin und Aza-Desoxy-Cytidin können in sich teilende Zellen eingebaut werden und DNMT3 inaktivieren; nach Zellteilungen kann die DNA dadurch weniger methyliert sein. Klinische Studien berichteten einen hemmenden Effekt von Aza-Desoxy-Cytosin auf die Tumorentwicklung. 5-Aza-2'-Desoxy-Cytidin wurde 2006 von der FDA unter dem Namen Dacogen für das Myelo-Dysplastische Syndrom freigegeben; ein anderer Name ist Decitabin. Eine gezielte Therapie durch Beeinflussung bestimmter Methylierungsmuster ist laut Artikel bislang und auf absehbare Zeit nicht möglich.