

Wikipedia · einfach zusammengefasst · Stand
Proteinbiosynthese
Als Proteinbiosynthese wird die Neubildung von Proteinen in Zellen bezeichnet. Bei diesem für alle Lebewesen zentralen Prozess werden durch die Ribosomen …
Inhalt6 Abschnitte
Grundprinzip der Proteinbiosynthese
Proteinbiosynthese ist die Neubildung von Proteinen in Zellen. Sie ist für alle Lebewesen zentral, weil Proteine aus Aminosäuren aufgebaut werden und ihre Reihenfolge durch die genetische Information festgelegt ist. Die Synthese findet im Rahmen der Genexpression an Ribosomen statt. Dort wird die Basenfolge einer messenger-RNA (mRNA) in die Aminosäurefolge eines Peptids übersetzt; dieser Schritt heißt Translation.
Die Bausteine sind proteinogene Aminosäuren. Jeweils ein Codon der mRNA wird dem passenden Anticodon einer transfer-RNA (tRNA) zugeordnet. Die tRNA bringt jeweils eine bestimmte Aminosäure mit. Benachbarte Aminosäuren werden durch Peptidbindungen verknüpft, sodass eine Polypeptidkette mit charakteristischer Aminosäuresequenz entsteht. Diese Kette kann sich zu einem dreidimensionalen, nativen Protein auffalten und wird häufig anschließend noch verändert.
Bei Prokaryoten liegt die ringförmige DNA frei im Zytosol. Die Proteinsynthese kann dort meist unmittelbar mit der gerade gebildeten mRNA beginnen. Bei Eukaryoten liegt das Genom auf mehrere Chromosomen verteilt im Zellkern. Dort findet die Transkription statt; die RNA wird danach bearbeitet und erst dann als mRNA durch eine Kernpore ins Zytoplasma exportiert, wo die Ribosomen arbeiten. Diese räumliche Trennung erlaubt zusätzliche Regulation, etwa durch posttranskriptionale Modifikationen oder den Ausschluss bestimmter RNA-Vorlagen von der Proteinbiosynthese.
Transkription als RNA-Kopie der DNA
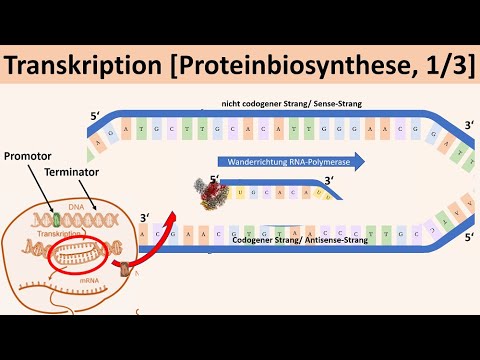
Im ersten Schritt werden Abschnitte von Genen auf der doppelsträngigen DNA aufgesucht, abgelesen und in einzelsträngige RNA-Moleküle umgeschrieben. Dabei werden den Nukleinbasen der DNA komplementäre RNA-Basen zugeordnet: Adenin, Guanin, Cytosin und Thymin der DNA entsprechen in der RNA Uracil, Cytosin, Guanin und Adenin. In RNA kommt Ribose statt Desoxyribose und Uracil statt Thymin vor.
Die genetische Information liegt in der Basenfolge. Ein Codogen auf der DNA wird zu einem Codon auf der mRNA transkribiert. Für die Transkription ist unter anderem eine RNA-Polymerase nötig. Dieses Enzym katalysiert den Aufbau des RNA-Polymers abhängig von der DNA-Vorlage. Als Bausteine dienen Ribonukleosidtriphosphate, nämlich UTP, CTP, GTP und ATP. Beim Verknüpfen zum Polynukleotid werden jeweils zwei Phosphatgruppen abgespalten.
Es kann verschiedene Typen der RNA-Polymerase geben: für Gene, die über mRNA für Proteine codieren, und für andere Gene, zum Beispiel für rRNA oder tRNA. Bei Eukaryoten findet die Transkription im Zellkern statt, daher muss die mRNA ins Cytosol exportiert werden. Prokaryoten besitzen kein Kernkompartiment; bei ihnen findet die Transkription im Zellplasma neben der Translation statt.
Reifung der RNA nach der Transkription
Bei Eukaryoten entsteht nach der Transkription zunächst prä-mRNA. Diese muss weiterverarbeitet werden. Beim Spleißen werden nicht-codierende Introns herausgeschnitten, sodass die benötigten Exons übrig bleiben. Consensussequenzen helfen beim Erkennen der Introns. Verschiedene snRNPs binden im Bereich der Introns und der Exon-Intron-Übergänge und bilden das Spleißosom. Dieses spaltet Phosphodiesterbindungen, schneidet Introns heraus und ligiert die Exons. Spleißen kommt auch bei rRNA und tRNA vor.
Beim Capping wird die Stabilität der RNA erhöht. Dazu wird am 5'-Ende der entstehenden prä-mRNA eine 5'-Cap-Struktur angehängt. Diese Cap schützt die mRNA vor dem Abbau durch 5'-Exonucleasen und Phosphatasen.
Bei der Polyadenylierung wird an das neu entstandene 3'-Ende ein Poly(A)-Schwanz angehängt, der bis zu 250 Nukleotide lang sein kann. Er erleichtert den Export der mRNA in das Cytoplasma und schützt das 3'-Ende vor enzymatischem Abbau.
Bei der RNA-Edition werden einzelne oder mehrere Nukleinbasen eines RNA-Moleküls nach der Transkription verändert, eingefügt oder ausgeschnitten. Dadurch kann zum Beispiel ein neues Stopcodon entstehen, das weiter stromaufwärts liegt; die Translation bricht dann früher ab, und es entsteht eine kürzere Isoform eines Proteins. RNA-Editieren kommt nur bei einigen Organismen, Zellen oder Zellorganellen vor und ist oft auf besondere Nukleotidsequenzen beschränkt.
Translation am Ribosom
Translation bedeutet die Übersetzung der Basensequenz der mRNA in die Aminosäuresequenz eines Proteins. In der mRNA bilden jeweils drei aufeinanderfolgende Basen, also ein Basentriplett, innerhalb des offenen Leserahmens ein Codon. Dieses Codon codiert für eine Aminosäure. Am Ribosom werden die Codons in ihrer Reihenfolge gelesen und die entsprechenden Aminosäuren zu einem Polypeptid verknüpft.
Ribosomen bestehen aus einer kleinen und einer großen Untereinheit. Sie bilden zwei nebeneinanderliegende Bindungsstellen, die A-Stelle und die P-Stelle. Weil ein Codon keine direkte strukturelle Ähnlichkeit mit der passenden Aminosäure hat, wird ein Vermittler benötigt: die tRNA. Jede tRNA besitzt eine Aminosäurebindungsstelle und ein Anticodon. Aminoacyl-tRNA-Synthetasen beladen die tRNAs spezifisch mit der passenden Aminosäure. Das Anticodon erkennt dann das komplementäre Codon auf der mRNA.
Die Translation hat drei Phasen. In der Initialphase wandert die kleine Untereinheit des Ribosoms an der mRNA entlang, bis sie das Startcodon AUG erreicht. Die passende Methionin-tRNA mit dem Anticodon UAC bindet daran und bildet den Initiationskomplex.
In der Elongationsphase lagert sich unter Spaltung von GTP die große Ribosomenuntereinheit an. Die Methionin-tRNA liegt zunächst in der P-Bindungsstelle, während sich die nächste tRNA an die A-Bindungsstelle anlagert. Eine Peptidyltransferase verknüpft Methionin mit der Aminosäure der folgenden tRNA. Dann wandern die Ribosomeneinheiten um ein Basentriplett weiter, und der Zyklus wiederholt sich.
Bei der Termination trifft das Ribosom auf eines der drei Stoppcodons. Da keine passende tRNA für eine Aminosäure vorhanden ist, stoppt die Translation. Terminations- oder Release-Faktoren binden an die A-Stelle. Sie verändern die Substratspezifität der Peptidyl-Transferase so, dass ein Wassermolekül aktiviert wird. Dadurch wird die Bindung zwischen Peptidkette und tRNA gelöst, das fertige Protein freigesetzt und die mRNA vom Ribosom getrennt.
Veränderungen des fertigen Proteins
Manche Polypeptidketten werden schon während der Translation durch spezielle Enzyme verändert; das heißt cotranslational. In den meisten Fällen werden Proteine aber erst nach Abschluss der Translation modifiziert; das heißt posttranslational. Chaperone beeinflussen die Proteinfaltung, also den Prozess, durch den eine Polypeptidkette ihre Form erhält. Davon hängt auch die Bildung von Proteinkomplexen ab.
Zellen können Proteine auf viele Arten gezielt verändern und dadurch funktionell unterschiedliche Proteinspezies schaffen. So wird das Proteom erweitert. Zu den Modifikationen gehören das Abspalten einzelner endständiger Aminosäuren oder längerer Peptidsequenzen bei Präkursor-Proteinen, das Einführen zusätzlicher Bindungen wie Disulfidbrücken zwischen Cysteinresten und das Anfügen funktioneller Gruppen.
Genannte Beispiele sind Hydroxylierungen, etwa Prolin zu 4-Hydroxyprolin durch Prolyl-4-Hydroxylase oder Lysin zu Hydroxylysin durch Lysylhydroxylase. Außerdem kommen Oxidationen vor, zum Beispiel kovalente Quervernetzungen über Lysinreste durch Lysyloxidase, sowie Carboxylierungen, Decarboxylierungen und viele weitere Veränderungen. Durch Glykosylierungen entstehen Glykoproteine, durch Acylierungen und Prenylierungen Lipoproteine.
Die einzelnen Modifikationsschritte werden jeweils durch besondere Enzyme katalysiert. Diese Enzyme kommen oft nur in bestimmten Organellen, Zellen oder Geweben vor. Reihenfolge und zeitlicher Verlauf der Modifikationen können vom Zellmilieu, von der Entwicklungsphase oder von Umgebungsbedingungen abhängen. Das Kollagenmolekül durchläuft zum Beispiel mehrere posttranslationale Modifikationen, von denen einige erst im Extrazellularraum stattfinden.
Zielsteuerung und Transport von Proteinen
Viele Proteine bleiben nicht im Zytosol, sondern müssen zum Extrazellularraum, zur Zellmembran oder in Organellen wie Chloroplasten, Mitochondrien, Peroxisomen, Zellkern oder Endoplasmatisches Retikulum gelangen. Für dieses Proteintargeting enthalten sie meist eine N- oder C-terminale Signalsequenz. In manchen Fällen entscheiden interne Signale der Peptidkette über den Zielort.
Proteine für das Endoplasmatische Retikulum tragen eine spezifische N-terminale Sequenz. Sie wird vom Signal Recognition Particle, einem Protein-RNA-Komplex, erkannt. Der SRP-Peptid-Ribosom-Komplex wird zum Endoplasmatischen Retikulum gebracht und dort gebunden. Die Translation wird durch die Membran fortgesetzt. Anheftende Ribosomen erzeugen den Eindruck eines rauen ERs. Im Endoplasmatischen Retikulum findet auch die Qualitätskontrolle neu synthetisierter Proteine statt.
Proteine für Chloroplasten besitzen eine N-terminale Signalsequenz, die gewöhnlich früh phosphoryliert wird. Hsp70, 14-3-3 und Toc64 können an Erkennung und Weiterleitung beteiligt sein. An der Chloroplastenoberfläche wird der Protein-Precursor-Komplex durch Strukturen des Translokonapparates der äußeren Chloroplastenmembran, TOC, erkannt. Unter GTP-Hydrolyse gelangt das Protein in den Intermembranraum oder über TIC in das Stroma. Für Membran oder Lumen der Thylakoide werden mindestens vier Wege genutzt: Sec-abhängig, SRP-abhängig, delta-pH/Tat-abhängig oder spontan.
Für Mitochondrien sind bei Hefe- und Tierzellen drei Importwege beschrieben: der Präsequenz-Importweg mit einer N-terminalen amphiphilen alpha-Helix, der Carrier-Protein-Importweg für Proteine der inneren Membran mit internen Signalen und der Importweg für Proteine der äußeren Hüllmembran mit beta-Fass-Motiv. Alle beginnen am TOM-Komplex der äußeren Membran. Tom20 und Tom22 erkennen N-terminale Signale, Tom70 erkennt interne Signale. Danach werden Proteine je nach Ziel über SAM, TIM23 oder TIM22 weitergeleitet. Die Präsequenz wird durch MPP, die mitochondrial processing peptidase, entfernt. Zusätzlich kann Glykosylierung das Targeting für den Einbau in die Zellmembran oder für die Exozytose ermöglichen; beide Wege führen meist über Golgi-Vesikel.
Lernvideos zu Proteinbiosynthese
 6:05
Die Transkription - Proteinbiosynthese Teil 1
Biologie - simpleclub · 4 Mio. Aufrufe
 5:23
Proteinbiosynthese - Komplette Zusammenfassung fürs Bio-Abi
Biologie - simpleclub · 1,4 Mio. Aufrufe
 11:45
Transkription [Proteinbiosynthese, 1/3] - [Biologie, Genetik, Oberstufe]
TeacherToby · 355.163 Aufrufe
 2:49
Proteinbiosynthese 3D in 3 Minuten - made EASY
MediCurs · 173.973 Aufrufe